泡菜乳酸菌发酵
泡菜乳酸菌发酵是蔬菜表面土著乳酸菌群落主导的兼性厌氧低盐自然发酵过程,属于食品微生物学与发酵工程重点研究的微生态体系。该过程依靠乳酸菌时序演替与种间协同代谢,将蔬菜可溶性糖转化为有机酸与风味物质,借助酸化、细菌素等多重生物抑制效应抑制腐败微生物,是传统泡菜风味、质构与贮藏安全性形成的核心机制。发酵体系内明串珠菌、魏斯氏菌、乳植杆菌等菌群依次更替,环境条件、原料基质显著影响代谢通路与群落稳态。现有研究表明,该体系并非单一菌种作用,而是环境与菌群持续耦合的微生态自组装过程;同时泡菜也是乳酸菌资源挖掘的天然载体,相关研究在发酵工艺优化、生物保鲜、益生菌筛选等领域具备应用价值。词条同时梳理了亚硝酸盐、生物胺等安全风险的形成规律与生物防控逻辑,客观阐述当前研究进展与现存局限。
词条名称:
泡菜乳酸菌发酵学科分类:
食品微生物学、发酵工程、蔬菜加工学核心类群:
乳植杆菌、明串珠菌、魏斯氏菌、片球菌发酵基质:
新鲜蔬菜、食用盐、浸出汁液、内源可溶性糖发酵类型:
兼性厌氧低盐固态自然发酵研究方向:
菌群演替、代谢调控、益生菌挖掘、发酵安全概念释义
基本定义
泡菜乳酸菌发酵,是以蔬菜表面附生的乳酸菌群落为功能主体,在低盐、低氧、常温或低温条件下,依靠微生物自身的时序增殖与协同代谢,将蔬菜中可溶性碳水化合物转化为有机酸、挥发性风味物质的蔬菜生物转化过程,是东亚传统腌渍泡菜品质形成的核心驱动机制。该过程区别于单纯盐渍防腐,食盐仅作为生态筛选压力,乳酸菌通过代谢重塑体系理化环境,形成对腐败微生物的生物抑制屏障。 在学术界定上,它属于植物原料基质的原位群落发酵,并非单一菌种独立作用,群落结构的动态变化,直接决定泡菜酸度、风味、质构与食用安全性。这一体系的特殊性在于,发酵菌种全部来源于原料本底,没有外源无菌接种的条件约束,属于开放型微生态系统。
认知边界
长期以来的科普表述容易简化为 “乳酸菌产酸防腐”,但该表述存在片面性。泡菜乳酸菌发酵是一套动态平衡的微生态过程,乳酸菌并非全程占据绝对优势,发酵前期杂菌、酵母菌、肠杆菌会短暂增殖,只有当产酸积累到临界 pH 阈值之后,乳酸菌才稳定占据生态优势。同时,乳酸菌本身不直接分解粗纤维,而是通过酸化改变蔬菜细胞果胶结构,带来脆嫩口感,脆度变化是理化作用而非微生物降解的结果。 泡菜乳酸菌发酵的本质是微生态自组装过程,环境参数筛选菌群,菌群代谢反过来改造环境,二者持续耦合,这也是自然发酵泡菜批次差异显著的底层逻辑。
发展溯源
传统实践
泡菜乳酸菌发酵的实践历史早于微生物学认知,国内多地、东亚不同区域均形成独立的泡菜制作技艺。传统制作依靠窖藏、坛装、水封等方式营造低氧环境,依靠经验控制盐量、温度,先民没有微生物概念,仅依靠感官判断发酵终点。 不同地域的原料、水源、坛器、气温,持续对本地乳酸菌群落进行定向驯化,形成地域性菌株特征。川渝泡菜、东北酸菜、各地腌菜的风味差异,根源不是盐或香料,而是长期驯化形成的土著乳酸菌群落组成差异。传统工艺的稳定性建立在长期本地菌群库的延续之上,一旦原料来源、环境发生改变,发酵失败概率会明显上升。
现代研究
19 世纪微生物学建立之后,研究者逐步从泡菜基质中分离得到乳酸菌,早期研究集中于菌种分离、产酸能力测定,以单一菌株生理试验为主。进入 21 世纪,高通量测序、代谢组、宏转录组技术普及,学界研究重心从单一菌种转向群落互作,打破单一菌株主导发酵的传统认知,转向菌群网络、代谢流、种间信号交互方向开展研究。 现阶段研究已经不再局限于解释传统泡菜原理,而是以此为模型,开发可控发酵工艺、筛选耐胁迫益生菌菌株、解析复杂发酵食品微生态组装规律,泡菜乳酸菌发酵已经成为研究蔬菜基质微生物群落的经典模式体系。
菌群演替
时序更替
泡菜发酵的乳酸菌群落存在稳定的时序演替规律,群落优势类群随氧气、pH、糖源消耗依次轮换。发酵初期,体系内残留氧气,兼性厌氧的肠杆菌、酵母菌、明串珠菌率先增殖,肠膜明串珠菌、食窦魏斯氏菌为早期优势乳酸菌,这类异型发酵乳酸菌快速利用糖分产酸,快速压低 pH,为耐酸乳植杆菌创造生存条件。 发酵中期,氧气耗尽,pH 持续下降,不耐酸的明串珠菌逐步衰退,植物乳植杆菌、戊糖乳植杆菌等耐酸同型发酵乳酸菌成为核心优势,产酸速率达到峰值;发酵后期,可溶性糖消耗殆尽,乳酸持续积累,高酸度抑制乳酸菌自身增殖,菌群总量回落,群落进入稳态,此时代谢活动放缓,风味缓慢熟化。 演替不是简单的先后取代,而是优势转换、多菌共存,即使在发酵中后期,明串珠菌、魏斯氏菌依然低丰度存在,持续贡献风味前体物质,并非完全消亡。
种间互作
乳酸菌类群内部存在协同、拮抗、营养竞争三类互作关系,共同维持群落稳态。协同关系体现在代谢互补,异型发酵菌株产生的甘露醇、短链有机酸,可作为其他乳杆菌的次级碳源;部分菌株分泌的代谢物,能够缓冲局部 pH 剧烈波动,避免单一菌株快速酸化抑制整个菌群。 拮抗效应主要来自细菌素、过氧化氢、有机酸的协同抑制,抑制亲缘相近的敏感菌株,划定自身生态位;竞争集中在葡萄糖、果糖等速效碳源,碳源匮乏时,耐酸、耐盐能力更强的菌株获得竞争优势。除乳酸菌内部互作之外,乳酸菌与酵母菌、少量非致病棒状杆菌存在跨类群互作,酵母菌分解部分有机酸,缓解酸胁迫,辅助菌群稳定,这也是自然发酵风味优于纯菌接种的重要原因。
代谢通路
产酸代谢
泡菜乳酸菌包含同型发酵与异型发酵两条核心糖代谢通路,两条通路并行发生,比例随发酵阶段、温度、盐度发生改变。同型发酵经由 EMP 途径,葡萄糖主要转化为乳酸,产酸效率高,是泡菜酸度的主要来源;异型发酵经由磷酸戊糖酮解途径,产物包含乳酸、乙酸、乙醇、二氧化碳、甘露醇,是香气物质的重要前体。 低温环境会提升异型发酵的占比,产物丰富,风味层次饱满;温度偏高,同型发酵快速占优,乳酸积累速度快,容易出现酸味尖锐、香气单薄。盐度升高会抑制全部乳酸菌代谢,异型发酵菌株对盐胁迫更敏感,更容易率先衰退。
风味形成
乳酸菌代谢是泡菜风味基底的构建者,但并非唯一风味来源。乳酸菌通过转氨、脱羧、酯合成途径,将蔬菜内源氨基酸、脂肪酸转化为醛、酮、酯类挥发性物质,降解蔬菜自带的芥子苷、萜类等刺激性物质,消减青草味、辛辣味,形成柔和发酵香气。 异型发酵产生的双乙酰、乙偶姻,是泡菜典型奶香、发酵香气的关键物质;甘露醇带来轻微清甜感,平衡乳酸的尖锐酸味。辣椒、大蒜、香辛料提供外加风味,乳酸菌代谢决定风味骨架,没有乳酸菌的代谢转化,腌渍蔬菜仅具备咸香,缺少发酵特征香气。
抑菌机制
乳酸菌形成多层级协同抑菌体系,分为理化抑制与生物活性物质抑制。第一层级是乳酸解离降低环境 pH,多数腐败菌、致病菌适宜中性至弱碱性环境,低 pH 破坏细胞膜通透性、抑制胞内代谢酶活性;第二层级是细菌素,小分子多肽类物质,靶向抑制革兰氏阳性腐败菌;第三层级是过氧化氢、短链脂肪酸协同作用,抑制霉菌、产膜酵母过度增殖。 该屏障存在时效性,发酵前期酸度不足,抑菌屏障尚未建成,存在致病菌短暂增殖窗口;只有 pH 稳定降至 4.2 以下,完整抑菌屏障才建立。该抑菌属于生物抑制,不具备灭菌效果,仅能压低腐败菌丰度,无法完全清除体系内全部微生物。
影响因子
原料基质
蔬菜基质是乳酸菌发酵的物质与菌种来源。原料可溶性糖含量决定发酵启动难易,白菜、萝卜糖分充足,发酵启动顺畅;黄瓜、芹菜可溶性糖偏低,发酵迟缓,杂菌风险更高。蔬菜表皮的附生微生物是自然发酵的接种源,过度清洗会大量冲刷土著乳酸菌,造成发酵启动延迟、菌群失衡。 原料新鲜度同样关键,萎蔫、腐烂蔬菜携带大量硝酸盐还原菌与腐败菌,会干扰乳酸菌的优势建立,极易出现发黏、异味。蔬菜内源酶会在发酵前期持续释放,参与果胶分解、硝酸盐转化,与乳酸菌代谢形成联动。
环境参数
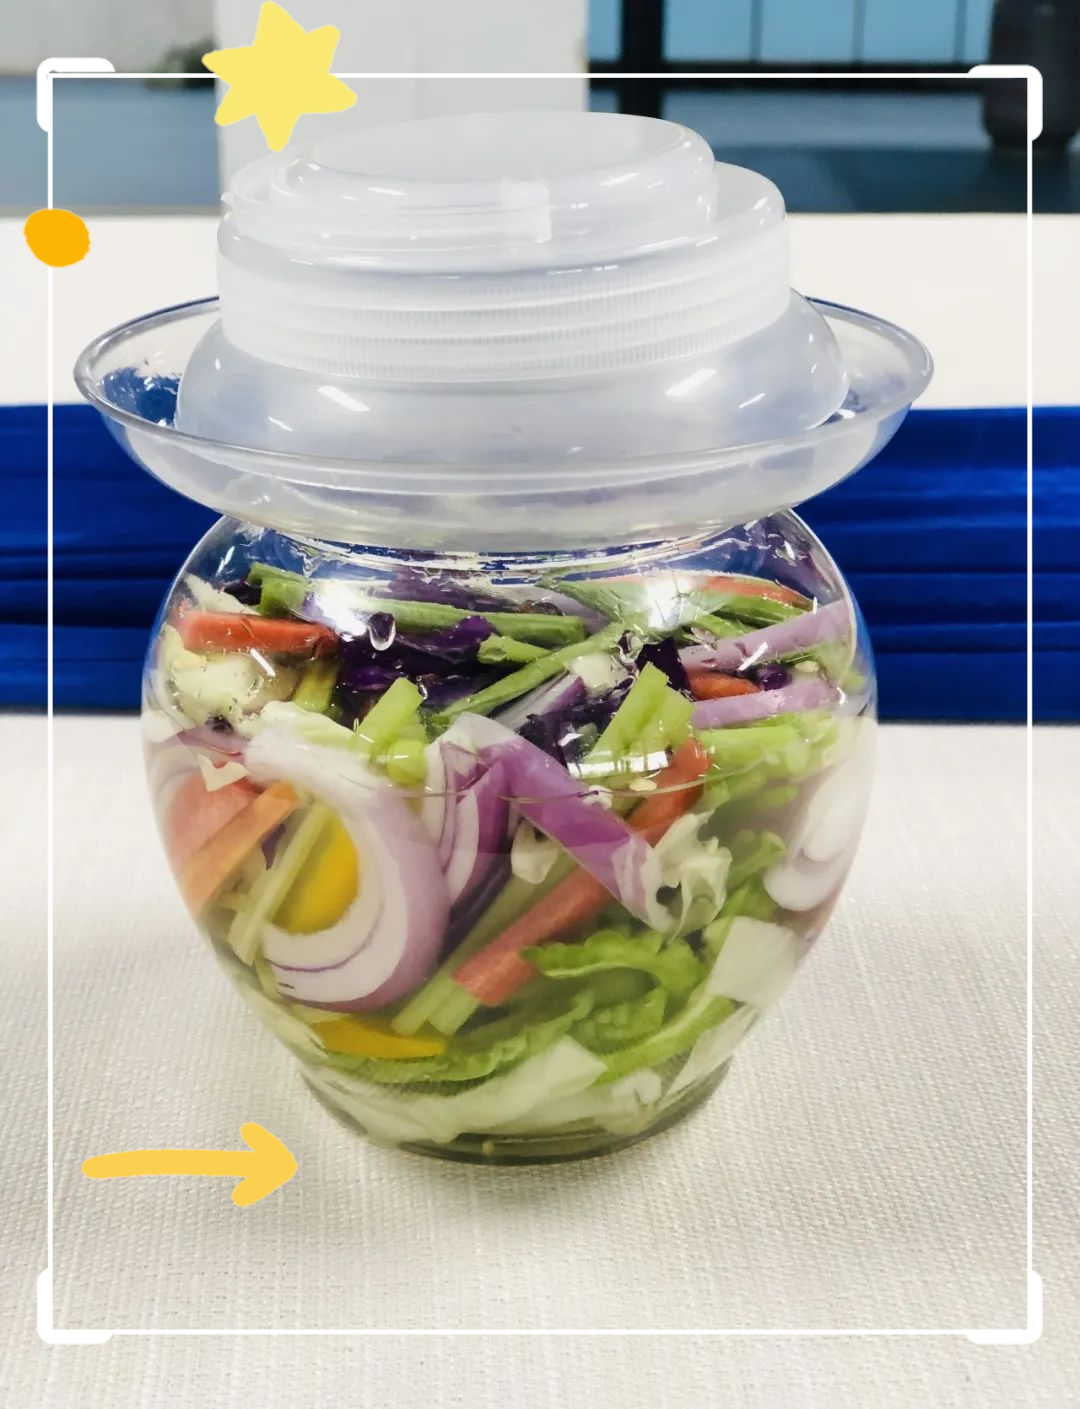
盐度、温度、溶氧是三大核心调控参数。传统自然发酵食盐质量分数多控制在 2% 至 5%,低盐区间可以选择性抑制不耐盐杂菌,同时保留乳酸菌活性;盐度超过 6%,乳酸菌代谢显著受抑;盐度低于 1.5%,杂菌难以被约束,极易腐败。 适宜发酵温度区间为 10 至 22 摄氏度,温度越低,演替速度放缓,菌群多样性更高;温度超过 28℃,同型发酵快速主导,菌群多样性下降。氧气是关键负向因子,持续溶氧会促进好氧霉菌、产膜酵母增殖,破坏乳酸菌厌氧优势,坛口水封、原料压实,目的就是消耗、隔绝氧气,维持兼性厌氧环境。
人工调控
现代工业化生产会采用人工接种、碳源补充、环境动态监测等方式调控发酵过程。接种复合乳酸菌菌剂,可以缩短发酵迟滞期,降低批次差异,稳定理化指标,但人为定向筛选优势菌株,会压缩土著菌群生存空间,菌群多样性下降,风味复杂度弱于自然发酵样品。 外源调控存在边界,额外添加碳源、缓冲剂会改变原有微生态平衡,容易造成风味偏离传统特征;单一菌株接种的体系抗扰动能力弱,环境小幅波动就容易出现发酵异常。复合菌剂接种更贴近自然演替规律,兼顾稳定性与风味。
品质评价
正常特征
乳酸菌发酵成熟的泡菜,pH 稳定在 3.2 至 4.2,总酸含量维持在合理区间,汤汁清亮,组织紧实脆嫩,发酵香气柔和,无刺激性异味。微生物层面,乳酸菌为优势菌群,致病菌、腐败菌丰度低于食品安全限值。 从群落角度,成熟泡菜菌群进入稳态,代谢速率平缓,后续低温储存属于缓慢后熟,风味持续微调,不会快速劣变。成熟泡菜的核心特征是菌群平衡,而不是乳酸菌数量无限升高。
异常表征
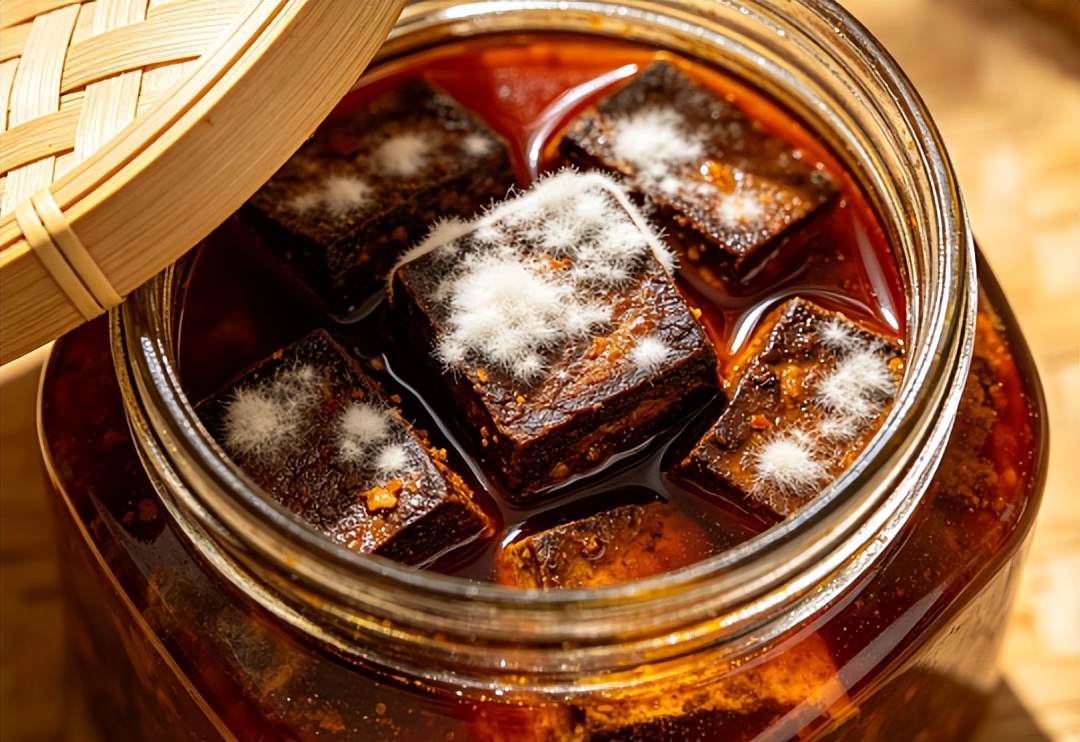
发酵失衡来自乳酸菌群落优势丢失,杂菌抢占生态位。表层厚白膜,多为产膜酵母在氧气充足条件下过度增殖,属于溶氧管控失效;汤汁黏稠、伴随腐臭味,是肠杆菌、腐败芽孢杆菌增殖,乳酸菌无法建立酸性屏障;酸味刺鼻、香气寡淡,多为高温下同型发酵独大,异型发酵菌群衰退。 出现异常的泡菜,微生物风险上升,不建议食用。发酵异常不等于乳酸菌完全消失,而是优势菌群发生转移,微生态稳态被打破。
安全解析
风险来源
泡菜乳酸菌发酵体系的主要安全关注点为亚硝酸盐、生物胺。亚硝酸盐由蔬菜内源硝酸盐,在硝酸盐还原菌作用下转化生成,乳酸菌本身不代谢生成亚硝酸盐。发酵前期酸度不足,硝酸盐还原菌活跃,亚硝酸盐出现峰值;随着乳酸菌持续产酸,pH 下降,硝酸盐还原酶活性被抑制,同时乳酸菌可以通过酶促与酸性化学途径降解已生成的亚硝酸盐,成熟后含量回落至安全区间。 生物胺来自杂菌对氨基酸的脱羧作用,稳定的乳酸菌优势可以抑制产胺杂菌,降低生物胺积累风险。
管控路径
安全管控的核心逻辑,是助力乳酸菌快速建立生态优势,缩短高风险的发酵前期窗口。优先选用新鲜低硝酸盐原料,控制盐度与温度,保证密封隔氧;家庭制作应当避开亚硝酸盐峰值期食用;工业化生产可配套 pH、亚硝酸盐在线监测,确定合理发酵周期。 依靠乳酸菌自身代谢实现安全控制,属于生物防控,区别于添加防腐剂的化学防控,也是传统泡菜的安全逻辑。
资源应用
菌株挖掘
泡菜是天然乳酸菌资源库,不同地域、不同原料的泡菜样品,可分离得到耐盐、耐酸、耐胃肠液的特色菌株。相较于商业模式菌株,泡菜源乳酸菌长期适应蔬菜基质,抗环境胁迫能力更强。当前筛选方向不再只考察产酸能力,同时兼顾抑菌活性、风味代谢特征、体外益生潜力,是食品微生物领域稳定的研究方向。 泡菜源乳酸菌的独特价值,在于菌株适配蔬菜发酵体系,在果蔬发酵场景下的适配性优于从乳制品分离的乳酸菌。
场景拓展
泡菜乳酸菌的应用已经跳出泡菜生产本身。筛选得到的菌株可制成发酵菌剂,用于其他腌渍菜、发酵果蔬汁生产;利用乳酸菌的抑菌特性,开发果蔬生物保鲜方案,替代部分化学保鲜剂;同时泡菜乳酸菌发酵体系,作为简易可观测的微生态模型,用于解析微生物群落组装、种间信号交互的基础研究。 部分菌株经过安全性评价后,可作为候选益生菌,用于功能性发酵食品开发,但体外试验结果不能直接等同于人体功效,相关结论仍需要临床试验支撑。
研究展望
前沿方向
当前前沿研究依托多组学联合技术,量化菌群互作网络、代谢物质流,解析噬菌体对乳酸菌群落的调控作用,噬菌体侵染会定向消耗特定乳酸菌,是过去长期被忽略的群落扰动因子。定向调控菌群配比,在保留传统风味多样性的前提下,压低亚硝酸盐峰值、调控生物胺生成;原位无损观测技术,实时追踪坛内微生态动态,弥补传统取样离散检测的短板。
现存局限
自然发酵体系的不可控性是行业核心痛点,菌群对温度、清洗、盐度扰动高度敏感,家庭小批量制作品质波动明显;泡菜源乳酸菌的体内益生机制研究大多停留在体外模拟,人体临床试验数据储备不足;复合菌剂的菌株配伍理论尚未完善,菌株之间的协同拮抗规律难以精准预判。 未来研究的目标,是打通基础群落研究和工业化生产的壁垒,在保留传统发酵风味多样性的前提下,建立稳定、可控、可复现的乳酸菌发酵技术体系。
词条附注
本词条聚焦泡菜发酵过程中乳酸菌主导的微生态机制,不单独罗列泡菜制作菜谱,不涉及特定品牌、商品推介。相关理化指标、菌群规律来自公开食品微生物领域文献,受原料、地域、工艺影响,数值存在合理波动范围,不做绝对化定性表述[1]。
参考文献
[1] 张和平,孟和毕力格。乳酸菌资源与功能研究进展 [J]. 微生物学报,2021,61 (05):1289-1306.
[2] 陈功。泡菜发酵微生态与品质调控研究 [M]. 北京:中国轻工业出版社,2020.
[3] 李宝坤,王光强。低盐蔬菜发酵体系乳酸菌群落演替与种间互作 [J]. 食品科学,2022,43 (12):28-36.
[4] 申光辉,张志清。泡菜中亚硝酸盐代谢与乳酸菌降解机制研究 [J]. 食品工业科技,2023,44 (03):345-353.
[5] 周光宏。食品微生物学 [M]. 北京:中国农业出版社,2019.